超越静态结构:Gator Bio BLI 如何助力结构生物学研究
作者:Benjamin Osborn, PhD
引言
生物膜干涉技术(BLI)是结构生物学研究工具箱中的重要补充。与 X 射线晶体学和冷冻电镜(cryo-EM)等提供“静态快照”的结构解析技术不同,BLI 能够提供实时的分子结合数据,从而帮助研究人员从动态角度进一步理解生物分子相互作用。BLI 的实时检测无需像核磁共振(NMR)和氢氘交换质谱(HDX-MS)等技术一样依赖昂贵的同位素或原子标记,因此其适用于难以制备的蛋白质,或需要连续研究多个相似蛋白的实验场景。不过,BLI 并不是单分子检测技术——要表征蛋白质之间的动态相互作用,仍需要相应的相互作用伙伴。下面介绍的 10 项已发表研究均将 Gator BLI 与传统结构生物学技术结合使用。这些案例从 BLI 最成熟的结构生物学应用开始,即解析参与分子相互作用的关键残基,并逐步介绍其较新的应用方向。其中,第 4 部分介绍了两篇相关论文:在这两项研究中,BLI 是计算设计的结合蛋白首次接受的实验室实测验证手段之一,其中包括 BindCraft 背后的验证数据集。
如需进一步了解具体实验方法,建议参考相关研究的原始论文。
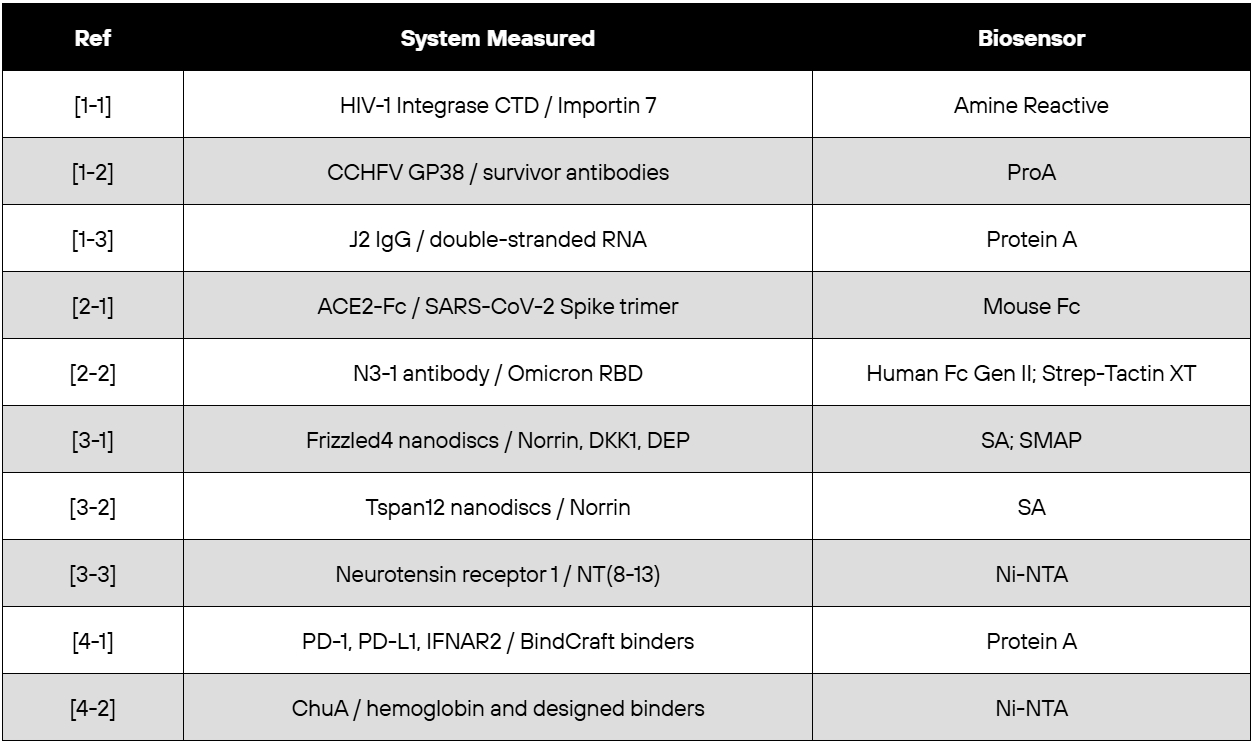
十篇论文概览
1 – 解析相互作用界面与结合残基
研究分子结合界面是 Gator BLI 最常见的应用之一。其中一种典型应用是表位分组:研究人员让两个结合分子依次与同一靶标结合,通过观察第一个结合分子是否会阻断第二个结合分子的结合,来判断它们是否识别相同或相近的表位。随着晶体结构解析和计算机模拟(in silico)方法不断发展,研究人员也越来越多地采用突变筛选,系统绘制靶标上对相互作用至关重要的残基,从而进一步解析蛋白质之间的结合界面。蛋白质-蛋白质相互作用是这类研究中最常见的应用,但 Gator BLI 同样可以用于研究蛋白质与其他生物分子之间的相互作用,例如 DNA/RNA [见1–3]。
[1-1] – HIV-1 整合酶需要进入细胞核,才能将病毒 DNA 整合到宿主基因组中。长期以来,研究人员一直认为 Importin 7 可能充当这一过程中的转运蛋白,并发现整合酶 C 端结构域中有两个富含精氨酸/赖氨酸的基序可能是其结合位点。耶路撒冷希伯来大学的研究人员结合多种技术对这一相互作用界面进行了直接表征:利用氢氘交换质谱(HDX-MS)和交联质谱(crosslinking MS)绘制两种蛋白的接触区域,利用 AlphaFold3 对复合物结构进行建模,并通过 Gator BLI 提供亲和力数据。研究人员通过 EDC/NHS 偶联,将整合酶 C 端结构域 (CTD) 固定到 Amine-Reactive (AR) 生物传感器上,并在较宽的浓度范围内梯度加入 Importin 7 作为分析物,通过稳态分析测定结合亲和力。结果显示,野生型整合酶 CTD 与 Importin 7 的结合亲和力(KD)为 17.9 nM;而在第二个核定位信号(NLS)基序中引入两个氨基酸替换(RRKAK → RAAAK)后,结合能力显著降低,KD 达到 299 nM。这一结果进一步证实,NLS 是实现高亲和力结合的关键区域(见图 1)。
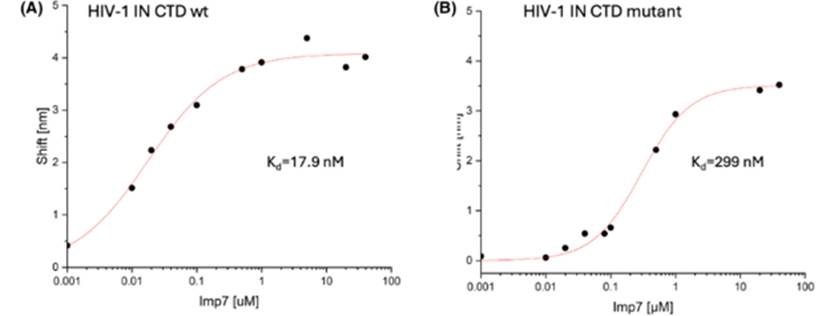
图 1:该图由上述论文中的图 5A 和图 5B 组成,展示了 HIV-1 整合酶(WT 和 RAAAK 突变体)与 Importin 7 的稳态结合情况。改编自 Bana J、Yariv A、Oppenheim T 等发表于 FEBS Open Bio 的研究(2026),doi:10.1002/2211-5463.70294。经 CC BY 4.0 许可使用。
[1-2] – 克里米亚-刚果出血热(CCHF)是一种由蜱传播的病毒性疾病,据报道其病死率最高可达 40%。世界卫生组织(WHO)已将克里米亚-刚果出血热病毒(CCHFV)列为公共卫生风险之一,目前尚无获批的疫苗或治疗药物。此前的一项研究发现,一种靶向病毒糖蛋白 GP38 的小鼠单克隆抗体 13G8能够保护小鼠免受致死性病毒攻击。值得注意的是,GP38 并非病毒中和靶点,因此,抗体与 GP38 的结合数据成为体外研究中的主要评价指标。在本研究中,研究人员从一名克里米亚-刚果出血热幸存者体内分离出靶向 GP38 的抗体,并利用 BLI 竞争实验确定这些抗体识别的抗原位点。其中,7 种抗体中有 3 种与 13G8 发生直接竞争。晶体结构分析进一步证实,幸存者来源的抗体 CC5-17 与 13G8 识别相同的表位,但其结合方向相对于 13G8 偏移了 22°(图 2D、3A)。为了研究这一共同结合位点能够耐受多大程度的序列变化,研究团队利用 Gator BLI 对点突变体进行筛选(图 3E)。他们将相关的 Aigai 病毒中的氨基酸残基引入 CCHFV GP38,以破坏抗体结合;同时,也将 CCHFV GP38 中的相应残基引入 Aigai GP38,以观察是否能够恢复结合。结果显示,大多数单点突变对 13G8 的结合影响很小,这表明病毒可能需要同时发生多处突变才能实现免疫逃逸。而单个 G296K 突变便显著降低了 CC5-17 的结合亲和力,这与其偏移 22° 的结合角度所预测的空间位阻相吻合。从潜在治疗应用来看,人源抗体 CC5-17 与 GP38 的结合亲和力明显高于 13G8,但在小鼠体内产生的保护作用反而较低。作者认为,这可能部分归因于 CC5-17 的结合速率较低。
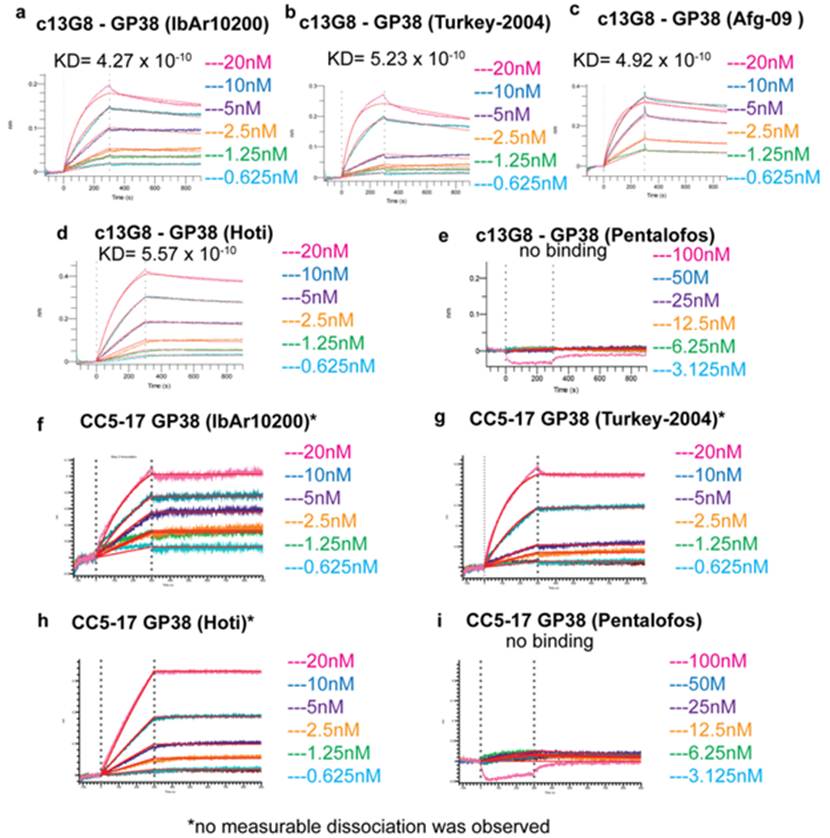
图 2:引自上述论文的补充图 4,展示了 13G8 小鼠来源抗体(a–e)和 CC5-17 患者来源抗体(f–i)与不同毒株来源的病毒 GP38 结合的曲线。改编自 Durie IA、Tehrani ZR、Karaaslan E 等发表于 Nature Communications 的研究(2022;13:7298),doi:10.1038/s41467-022-34923-0。经 CC BY 4.0 许可使用。
[1-3] – 并非所有具有研究价值的结合体系都是蛋白质-蛋白质相互作用。J2 是检测细胞内双链 RNA(dsRNA)的经典抗体,可用于识别病毒复制中间体,以及筛查 mRNA 治疗产品中的炎症相关杂质。尽管 J2 已被广泛使用了 30 多年,但此前一直没有明确其具体的结合对象。来自美国国立糖尿病、消化及肾脏疾病研究所(NIDDK)的研究人员利用 BLI 完成了这项结合特性的系统表征。他们将 J2 IgG 作为配体固定在 Gator Bio 的Protein A 生物传感器上,以不同核酸作为分析物进行检测。结果表明,J2 能够强烈结合 dsRNA,而 dsDNA、ssRNA、ssDNA 以及 RNA-DNA 杂交体均未产生明显信号,这意味着 J2 并不能识别细胞中的 R-loop 结构(图 1C、1D)。在进行突变实验之前,研究人员首先测试了不同长度的 dsRNA,由此确定 J2 实际可检测的结合长度阈值约为 14 bp,明显低于此前通过原子力显微镜估算的约 40 bp(见下方图 3)。基于 dsRNA/J2 共晶体结构,研究团队对多个互补决定区(CDR)残基进行了突变,并利用 BLI 测量这些突变对结合能力的影响。结果显示,两个酪氨酸(Tyr)残基对结合至关重要:Y50A 和 Y52A 突变会显著降低结合能力,而 Y50F 和 Y52F 几乎没有明显影响。这一结果表明,真正发挥作用的可能是酪氨酸芳香环与 dsRNA 小沟之间形成的范德华力相互作用,而不是酚羟基本身。研究人员还尝试在 N101 和 S33 位点引入带正电荷的碱性残基,理论依据是增加正电荷可能有助于与 RNA 的磷酸骨架结合。然而,结果恰恰相反:这两种突变均削弱了结合能力,而非增强结合。最后,研究团队还评估了 AlphaFold3 能否准确预测这一复合物结构。结果显示,AlphaFold3 能够较为准确地预测 J2 Fab 及其 CDR 环结构,与晶体结构的偏差约为 1 Å;但它预测的 dsRNA 却远离真实的结合表位,而这一真实结合位点此前已经通过 BLI 得到确认。作者认为,这一预测偏差可能与 PDB 数据库中可用于 AlphaFold3 训练的抗体-核酸相互作用界面结构数量有限有关。
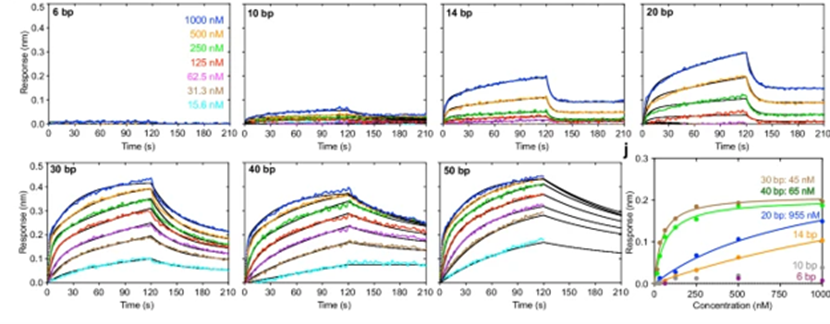
图 3:引自上述论文的图 1I,展示了不同长度 dsRNA 的结合曲线;图 1J 右下角展示了各长度 dsRNA 的稳态结合曲线。改编自 Bou-Nader C、Juma KM、Bothra A 等发表于 Nature Communications 的研究(2026;17:635),doi:10.1038/s41467-025-67414-z。经 CC BY 4.0 许可使用。
2 – 追踪不同变体与物种中的结合特性
除了定位结合位点之外,Gator BLI 还可以追踪该位点在物种进化和突变过程中发生的变化,以及不同物种之间结合亲和力的差异。BLI 采用基于微孔板的检测形式,可以在短时间内连续测试多个结合分子与多个靶标,而无需对样品进行多次重复处理。下面介绍的研究涵盖了两个典型场景:病毒如何通过突变逃避宿主抗体的识别,以及病毒如何获得感染新宿主的能力。
同样的实验思路也广泛应用于工业药物研发。在一种治疗性抗体进入毒理学研究之前,需要确认它能够以与人源靶标相近的亲和力结合模型动物的靶标。否则,毒理学实验结果将难以准确解读。借助 BLI,这些测试可以在同一块微孔板上完成:分别检测抗体与人、食蟹猴、小鼠和大鼠的靶标同源蛋白之间的结合,并且四种靶标均可使用相同的生物传感器化学体系进行检测。
[2-1] – 自新冠疫情暴发以来,SARS-CoV-2 向动物宿主跨种传播一直是研究人员关注的问题,其中小鼠尤其受到关注,因为它可能成为病毒的潜在宿主。小鼠 ACE2(mACE2)与早期 SARS-CoV-2 毒株的 Spike 蛋白几乎无法有效结合。EPFL 的研究人员希望了解:在群中推动免疫逃逸的病毒突变,是否也会同时扩大 SARS-CoV-2 的宿主范围?研究人员将二聚体 ACE2-Fc 捕获在 Gator Mouse Fc 生物传感器上,并以三聚体 Spike 蛋白作为分析物进行梯度检测。首先,研究团队对猫、狗和水貂进行了初步筛选,结果显示,这些物种的 ACE2 均能够与野生型 Spike 蛋白结合。相比之下,小鼠 ACE2 在最初的武汉株中几乎没有结合信号,但在后续出现的多个关注变异株中,结合能力明显增强(图 S1)。进一步的浓度梯度实验显示,即使 Spike 蛋白浓度达到 300 nM,野生型 Spike 与 mACE2 的结合仍然非常弱;而 Alpha、Beta 和 Gamma 变异株的结合亲和力分别处于约 25–45 nM 的范围,Omicron 则达到约 2–3 nM(见图 4)。图 S10 进一步展示了突变筛选实验。研究人员分别在野生型 Spike 的基础上引入 N501Y、K417N 和 E484K 单点突变。结果发现,任何单一突变都不足以使 Spike 获得与 mACE2 的明显结合能力;而同时引入 N501Y/E484K 双突变后,则能够赋予 Spike 与 mACE2 的结合能力。
这一结果表明,驱动 SARS-CoV-2 免疫逃逸的突变也可能改变病毒与不同物种 ACE2 的相互作用,从而影响其潜在宿主范围。
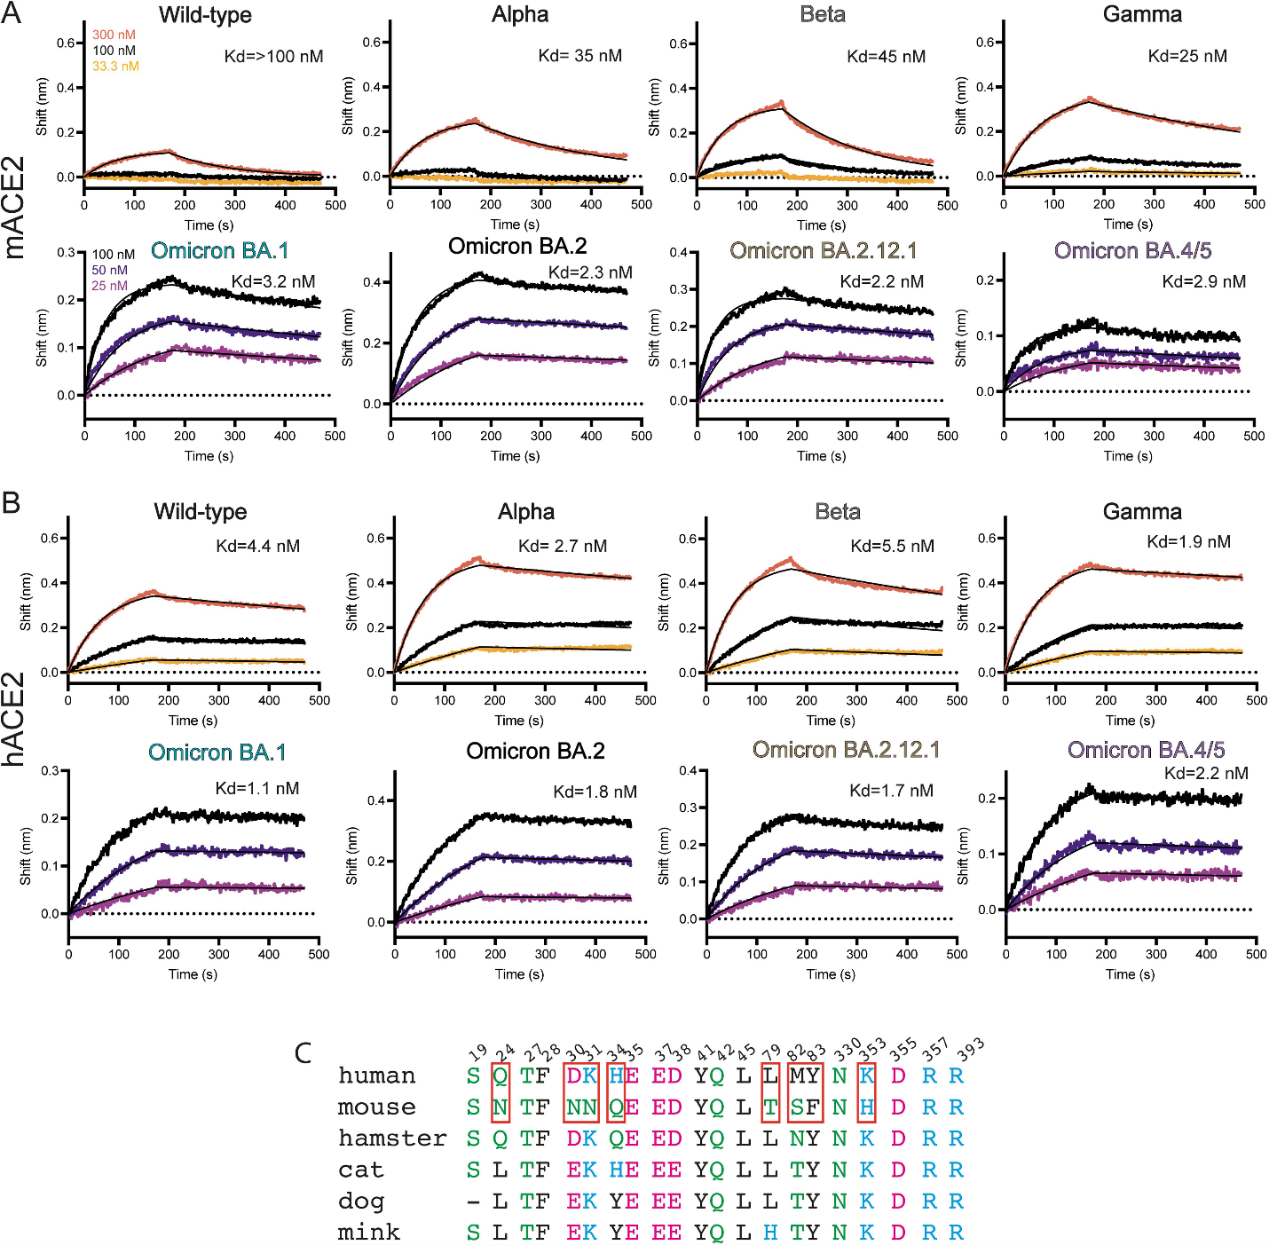
图 4:引自上述论文的图 1,展示了不同 SARS-CoV-2 Spike 蛋白与小鼠及人 ACE2 的结合曲线,以及多个物种之间 ACE2 结合位点残基的差异。改编自 Ni D、Turelli P、Beckert B 等发表于 PLOS Pathogens 的研究(2023;19(4):e1011206),doi:10.1371/journal.ppat.1011206。经 CC BY 4.0 许可使用。
[2-2] – 除了提高 Spike 蛋白与小鼠和人 ACE2 的结合能力外,Omicron 还能够逃避 N3-1 抗体的识别。N3-1 是从第一波新冠患者体内分离得到的一种强效抗体,在 Omicron 出现之前,它能够中和当时已知的所有关注变异株。Omicron BA.1 的受体结合域(RBD)共有 15 个突变,其中只有一个突变位点会直接接触 N3-1 抗体。然而,将该位点恢复为原始序列后,抗体结合能力仍未恢复。研究人员通过 human Fc Gen II 生物传感器测定了这一结合变化。尽管 BA.1 携带的突变数量少于后续出现的 Omicron 变异株,但其解离速率明显更快。原因并不在于抗体结合口袋本身发生了改变,而是由于 373 位点由丝氨酸(S)变为脯氨酸(P),导致附近的一个环结构发生翻转,遮挡了抗体需要进入的疏水口袋。因此,与原始毒株相比,Omicron Spike 蛋白的 RBD 更频繁地处于“闭合”状态,使 N3-1 抗体所需的结合构象很少暴露出来,从而实现抗体逃逸。研究团队进一步利用 Strep-Tactin XT 生物传感器对该关键位点的所有可能氨基酸替换进行了筛选。研究人员无需纯化突变蛋白,而是直接使用澄清后的表达上清液进行检测。结果发现,其中一些突变能够提高结合亲和力,但即使对这一特定位点进行进一步工程化改造,也无法克服更大范围的蛋白质构象变化所带来的影响。Strep-Tactin XT 是 Gator Bio 独有的生物传感器技术。其支持直接从无细胞表达体系和粗表达样品中捕获目标蛋白,从而省去蛋白纯化步骤。这种便捷的检测方式可能也是为什么 2026 年的三篇 AI 结合蛋白设计预印本——BoltzGen、BoltzProt-1,以及 Candido 等人关于蛋白质语言模型的研究——均采用 Gator Bio 平台开展结合实验的原因之一。
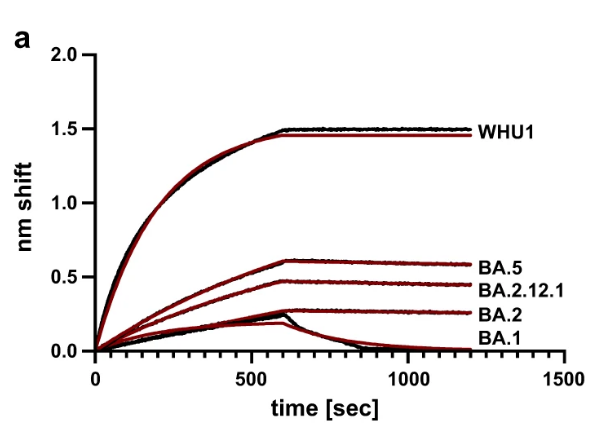
图 5:引自上述论文的图 4A,展示了患者来源的 N3-1 抗体与野生型 SARS-CoV-2(WHU1)及 Omicron 变异株的结合情况,直观体现了 Omicron 如何逃避抗体结合。改编自 Goike J、Hsieh CL、Horton AP 等发表于 Communications Biology 的研究(2023;6:1250),doi:10.1038/s42003-023-05649-6。经 CC BY 4.0 许可使用。
3 – 膜蛋白与脂质环境
前面的章节主要讨论的是可溶性蛋白质,而膜蛋白一直以来都以难以表征而著称。膜蛋白的构象与其所处的体系密切相关,例如纳米盘 [3-1、3-2] 或去垢剂胶束 [3-3],因此在进行结合研究时,需要尽可能保持其接近天然状态的构象。此外,膜蛋白通常制备成本高、纯化困难,不仅产量较低,而且所得蛋白往往较为脆弱,难以在流体系统中进行检测。Gator BLI 每个孔仅需 40 µL 样品,因此即使是较难制备的膜蛋白样品,也能得到更充分的利用。在此基础上,XT Optics 可进一步提供 3 倍的信噪比提升,使原本信号变化较小的纳米盘检测也能够获得具有实际分析价值的结果。这些优势结合起来,使研究人员能够在接近天然的模拟环境中维持膜蛋白的构象,同时仍然能够清晰检测分析物与膜蛋白之间的结合。
[3-1] – 斯坦福大学 Weis 实验室的研究团队开发了一种利用 split GFP tether(分裂型 GFP 锚定结构)的方法,以确保完整形成的蛋白质复合物能够组装在同一个纳米盘中。定量 Western blot 结果证实,同型二聚体纳米盘中每个纳米盘约含 2 个 Frizzled4,而异源二聚体纳米盘中则约含 1 个 Frizzled4 和 1 个 LRP6。为了验证这些复合物是否具有生物学功能,研究人员进一步采用 BLI 进行检测。他们将生物素化纳米盘固定在 Streptavidin ( SA )生物传感器上。结果显示,Norrin 与 Frizzled4 同型二聚体的结合亲和力为 0.46 nM,而 DKK1 与 Frizzled4-LRP6 异源二聚体的结合亲和力为 5.6 nM。随后,为测定 Dishevelled-2(Dvl2)的 DEP 结构域与固定于纳米盘上的 Frizzled4-LRP6 异源二聚体之间的结合动力学,研究人员采用了配备 XT Optics 的 SMAP 生物传感器。实验将信号变化控制在 10 nm 以内,以避免纳米盘过度密集堆积所产生的空间拥挤伪影。研究人员在同一根生物传感器上进行了多轮结合-解离循环:第一轮不加载配体,随后将 DEP 结构域浓度从 10 nM 逐步增加至 32 µM。为排除基线漂移和 DEP 非特异性结合的影响,他们同时使用一根匹配的空纳米盘参考传感器,在另一根探针上对相同样品进行同步检测。结果显示,无论 Norrin 是否存在,DEP 结构域的结合浓度均约为 200 nM。这表明,Frizzled4 与 LRP6 形成异源二聚体并不会改变 Frizzled4 招募 Dishevelled 的能力。需要注意的是,这项研究发表于 SA XT 生物传感器推出之前。对于目前的生物素化纳米盘捕获实验,我们推荐使用 SA XT,其在保持相同链霉亲和素捕获化学体系的基础上,结合 XT Optics 的灵敏度提升,能够更清晰地解析 DEP 这类低信号变化的梯度结合实验。
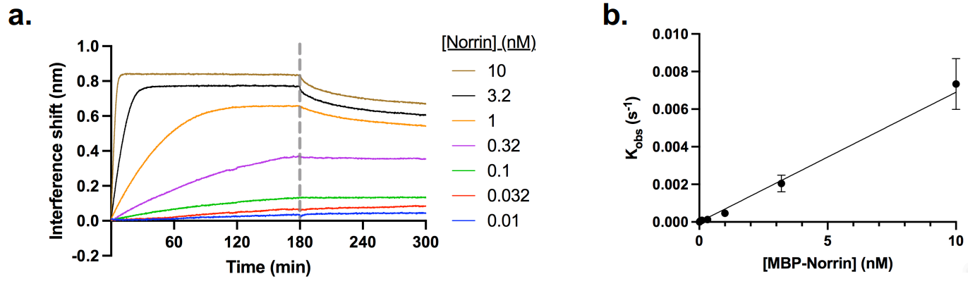
图 6:引自上述论文的补充图 4a 和 4b,展示了 Norrin 与固定在生物传感器上的脂质纳米盘之间的结合情况。改编自 Bruguera ES、Mahoney JP、Weis WI 发表于 Journal of Biological Chemistry 的研究(2022;298(4):101628),doi:10.1016/j.jbc.2022.101628。经 CC BY 4.0 许可使用。
[3-2] – Norrin 与 Wnt 一样能够激活 β-catenin 信号通路,但这一过程需要共受体四跨膜蛋白 Tspan12(tetraspanin Tspan12)参与。当这一复合物形成时,Norrin 是否会与 Tspan12 直接发生相互作用?斯坦福大学 Weis 实验室的研究人员纯化了 Tspan12,并将其重构到生物素化脂质纳米盘中,再将纳米盘固定在Streptavidin (SA) 生物传感器上,以 Norrin 作为分析物进行梯度检测。结果显示,Norrin 与 Tspan12 的结合亲和力为 10.4 nM,且与在 GDN 去垢剂胶束中的检测结果相比,Norrin 在纳米盘环境中的结合更强。随后,研究人员利用 AlphaFold 对 Norrin-Tspan12 复合物进行结构建模,并通过突变实验验证预测的结合位点。单独对 Norrin 进行电荷反转突变后,其结合亲和力最多下降约两个数量级;而当研究人员同时对 Tspan12 上对应的结合位点进行补偿性电荷反转(Norrin K102E/R121E 与 Tspan12 E196K/S199K)后,结合能力得到恢复。这一结果精确验证了 Norrin 与 Tspan12 之间的预测相互作用位点。
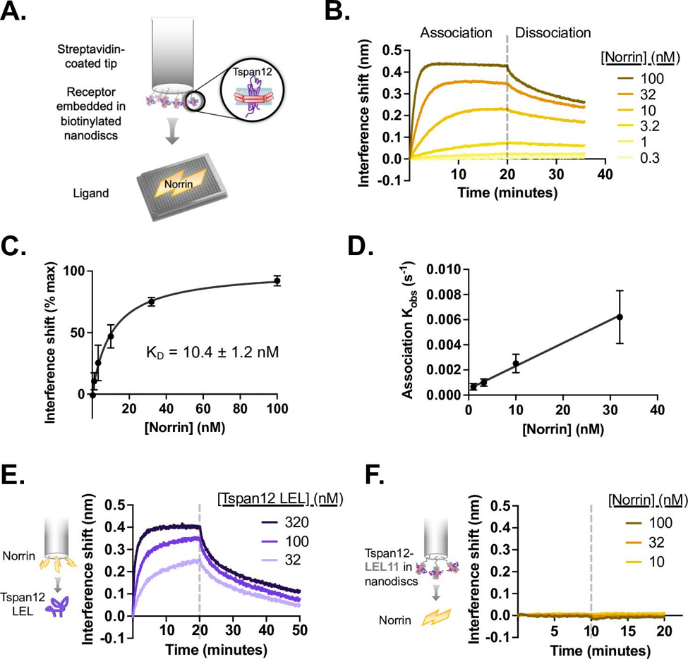
图 7:引自上述论文的图 1,展示了 Norrin-Tspan12 相互作用,以及 Tspan12 的大胞外环(LEL,Large Extracellular Loop)与 Norrin 的相互作用。研究结果表明,该环结构是 Tspan12 特有的:在所测试的浓度范围内,Tspan11 的 LEL 环未表现出与 Norrin 的结合。改编自 Bruguera ES、Mahoney JP、Weis WI 发表于 eLife 的研究(2025;13:RP96743),doi:10.7554/eLife.96743。经 CC BY 4.0 许可使用。
[3-3] – 对于 GPCR(G 蛋白偶联受体)而言,去垢剂的选择通常首先考虑的是蛋白质稳定性。其中,十二烷基麦芽糖新戊二醇(LMNG,lauryl maltose neopentyl glycol)是目前最常用的去垢剂之一,在已经解析的 GPCR 结构中,有超过一半使用了 LMNG。但需要注意的是,适合晶体结构解析的稳定状态,并不一定意味着蛋白质处于活性构象。研究人员将经过热稳定性改造的神经降压素受体 1(neurotensin receptor 1,NTSR1)变体分别纯化到三种不同的去垢剂体系中,并使用 Gator Prime 测定其与激动剂的结合亲和力。与直接固定受体不同,研究人员首先通过 6-His 标签将小分子肽激动剂 NT(8–13)加载到 Ni-NTA 生物传感器上,再以受体作为分析物进行梯度检测。这样可以让受体保持在溶液状态,从而减少固定受体可能带来的影响。结果显示,在癸基麦芽糖苷、十二烷基麦芽糖苷和 LMNG 中,结合亲和力分别为 13.7 nM、35.9 nM 和 94.9 nM。这意味着,在本研究条件下,配体结合能力与受体稳定性呈反向关系:能够更好地稳定受体的去垢剂,并不一定能够使受体保持更有利于激动剂结合的活性构象。
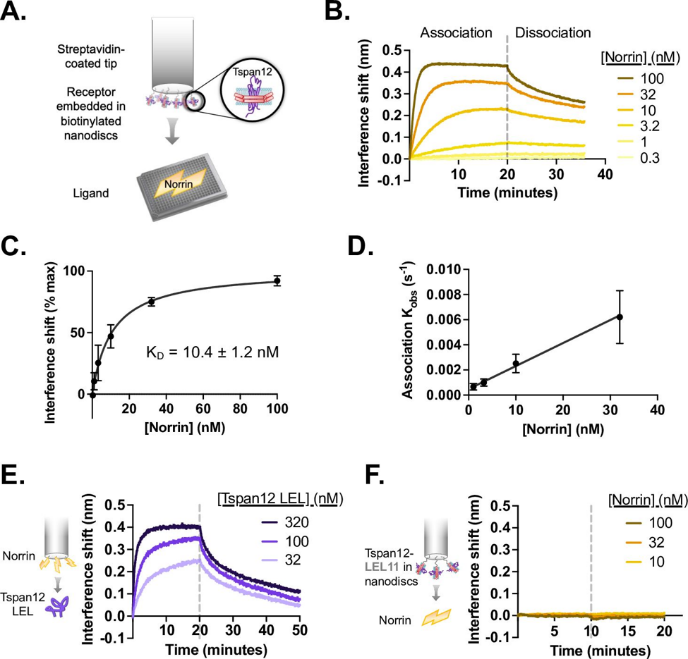
图 8:引自上述论文的图 2,展示了对于该 GPCR,随着膜环境从限制性最低的去垢剂体系(上)逐渐过渡到限制性最高的体系(下),其结合亲和力的变化。改编自 Bower JB、van der Velden WJC、Gomez KP 等发表于 Protein Science 的研究(2026;35(2):e70475)。doi:10.1002/pro.70475。经 CC BY 4.0 许可使用。
膜蛋白应该使用纳米盘还是去垢剂体系进行检测?在您确定实验材料和方案之前,我们的应用团队可以与您一起评估并确定合适的固定策略。
4 – 验证设计的结构
4 – 前面的研究都是对实验室中已经存在的分子或复合物进行验证。如今,结构预测技术已经发展到这样的程度:AlphaFold 几乎可以对你提出的任何复合物进行结构建模,而 Boltz 等设计工具则可以进一步为其设计结合蛋白。但在实验室数据证实这种相互作用真实存在之前,这些结构和结合关系都只能被视为一种假设。
在前面的案例中,我们已经多次提到 AlphaFold:[1-1] 将 AlphaFold3 预测与 NLS 突变实验结合,[3-2] 则通过相互的电荷置换突变验证了 AlphaFold Multimer 预测的结合界面。这两项研究的实验结果均与结构预测相一致。而 [1-3] 则展示了另一种情况:AlphaFold3 对抗体整体结构的预测非常准确,与实验结构的偏差仅约 1 Å,但它预测的 RNA 却远离实际的结合位点。从头结合蛋白设计本身就具有较大的不确定性,这也是为什么许多 AI 驱动的发现项目会在进入实验室之前,先通过 in silico 计算生成数千个候选结合蛋白。最终能够通过初步筛选的候选物通常仍有数百个,而每一个候选物都可能成为用于重新训练和优化 AI 算法的潜在数据点。因此,BLI 作为一种高通量检测技术,无需蛋白纯化即可测定结合动力学和亲和力,往往成为新设计结合蛋白进入湿实验室后首先接受的实验验证手段。我们在上一篇博客中介绍过几项采用 AI 指导结合蛋白设计的预印本研究;下面再介绍两项已发表的研究,它们均利用 Gator BLI 对从头设计的结合蛋白进行了实验验证。
[4-1] – BindCraft 是一种开源的从头结合蛋白开发方法,以 AlphaFold2 为基础,通过迭代优化的设计流程生成结合蛋白。作者表示,该方法无需依赖高通量湿实验筛选即可获得有效设计,并在 12 个不同靶标上的实验中取得了 10%–100% 的成功率,平均为 46%。BLI 是验证这些结合蛋白设计的第一轮实验方法。图 2b 展示了其中具有代表性的结合曲线;同时,BLI 还用于进行脱靶分析,以判断结合蛋白究竟具有良好的靶标选择性,还是仅仅具有较强的非特异性结合倾向。研究团队将带 Fc 标签的 PD-1、PD-L1 和 IFNAR2 固定在 Gator Bio 的 Protein A 生物传感器上。这三种受体在结构上较为相似,均具有免疫球蛋白样折叠结构。随后,研究人员将这些生物传感器分别浸入浓度为 1 µM 的各个候选结合蛋白中进行检测。结果显示,所有候选结合蛋白均未出现交叉反应,表明这些从头设计的结合蛋白具有良好的靶标选择性。
[4-2] – 致病性大肠杆菌(E. coli)会从宿主血红蛋白中夺取血红素辅因子,从而获取生长所需的铁元素。负责这一过程的转运蛋白 ChuA 会短暂结合血红蛋白,迅速从中提取血红素后释放血红蛋白。这种相互作用十分短暂,以至于研究团队无法通过晶体学或冷冻电镜捕获这一复合物。而 BLI 能够对这种瞬时相互作用进行检测。研究人员将血红蛋白固定在 Ni-NTA 生物传感器上,并以 ChuA 作为分析物进行浓度梯度检测,测得其结合亲和力(KD)为 71.5 nM,同时具有较快的结合和解离速率。这一结果与 ChuA “结合—提取—释放” 的转运机制假设相一致。研究人员利用 AlphaFold 预测 ChuA 的结构,并将其胞外环 7 和 8 确定为可能的结合位点。随后,他们利用 RFdiffusion 和 ProteinMPNN 设计能够覆盖这些环结构的结合蛋白。研究团队共生成了约 20,000 个 in silico 候选设计,并选取其中排名最高的 96 个候选物进入实验室,通过细菌生长实验进行筛选。其中,8 个候选蛋白能够抑制大肠杆菌在血红蛋白琼脂培养基上的生长。进一步的 BLI 检测显示,其中 3 个具有抑菌作用的结合蛋白的结合亲和力分别为 127 nM、84.9 nM 和 71.4 nM。与此同时,这些抑制性结合蛋白与另外 3 种无关的 E. coli 蛋白均未表现出结合,进一步证实了这些计算设计的结合蛋白能够特异性靶向 ChuA,而非产生非特异性结合。
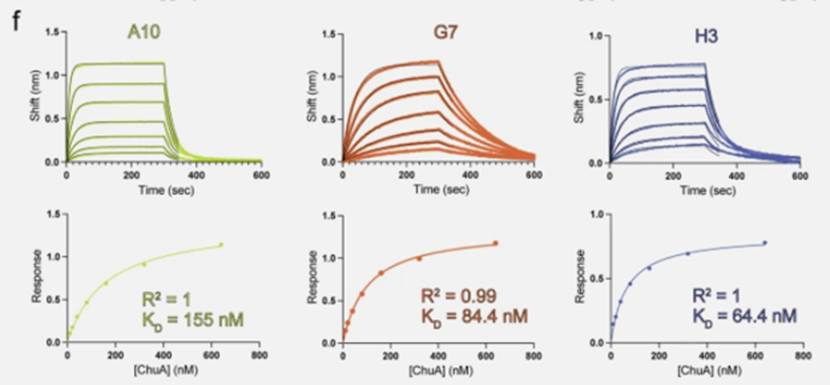
图 9:引自上述论文的图 5f,展示了具有抑制细菌生长作用的结合蛋白与 ChuA 的结合亲和力(KD)。改编自 Fox DR、Asadollahi K、Samuels I 等发表于 Nature Communications 的研究(2025;16:6066)。DOI:10.1038/s41467-025-60612-9。经 CC BY 4.0 许可使用。
如果您正在筛选计算设计的结合蛋白,并希望湿实验验证的效率能够跟上计算设计的速度,请告诉我们您正在表达的蛋白以及实验规模。
最后总结
这 10 项研究利用 Gator BLI 测量了传统“静态结构”技术难以捕捉的相互作用。ChuA 与血红蛋白的结合和解离速度过快,晶体学或冷冻电镜难以捕获其复合物结构。BLI 测得其结合亲和力为 71.5 nM,并表现出较快的结合和解离速率,这与“转运蛋白结合血红蛋白、提取血红素并释放血红蛋白”的作用机制相一致。
在 SARS-CoV-2 的研究中,单一 Spike 突变不足以使病毒获得与小鼠 ACE2 的结合能力,必须同时存在 N501Y 和 E484K 两个突变。为了验证这一点,研究团队在同一块微孔板上对 5 种病毒变体进行了完整的浓度梯度检测。
膜蛋白的研究则更加复杂。在 [3-3] 中,研究团队将神经降压素受体分别纯化到 3 种不同的去垢剂体系中,并测得其激动剂结合亲和力相差约 7 倍。其中,最能稳定受体的去垢剂反而对应最弱的结合能力。这类实验通常产生较小的信号变化,而 XT Optics 可提供 3 倍的信噪比提升,帮助研究人员解析这些细微差异。
计算设计的结合蛋白则代表了更前沿的应用方向。在 BindCraft 和 ChuA 的研究中,BLI 都是新设计的结合蛋白进入湿实验室后接受的首轮实验验证。[2-2] 中的抗体研究虽然并非从头设计,但采用了类似的实验流程:研究团队直接使用澄清后的表达上清液,无需进行蛋白纯化,即可在 Strep-Tactin XT 生物传感器 上筛选某一氨基酸位点的所有可能替换。Strep-Tactin XT 是 Gator Bio 独有的生物传感器技术。
上述 10 篇论文在同一台仪器上使用了 7 种不同的捕获化学体系,且不同实验之间无需更换仪器配置。这 7 种体系包括:Protein A、SA、Human Fc Gen II、Ni-NTA、Strep-Tactin XT、Amine Reactive 和 SMAP。这就是丰富的生物传感器选择所带来的优势。
如果您正在开展结构生物学相关研究,我们的应用团队可以根据您的研究问题,协助您设计合适的实验方案。
参考文献
[1-1] Bana J, Yariv A, Oppenheim T, et al. Importin 7 mediates the nuclear import of HIV-1 integrase via a specific interacting interface. FEBS Open Bio. 2026. doi:10.1002/2211-5463.70294
[1-2] Durie IA, Tehrani ZR, Karaaslan E, et al. Structural characterization of protective non-neutralizing antibodies targeting Crimean-Congo hemorrhagic fever virus. Nature Communications. 2022;13:7298. doi:10.1038/s41467-022-34923-0
[1-3] Bou-Nader C, Juma KM, Bothra A, et al. Structural basis of double-stranded RNA recognition by the J2 monoclonal antibody. Nature Communications. 2026;17:635. doi:10.1038/s41467-025-67414-z
[2-1] Ni D, Turelli P, Beckert B, et al. Cryo-EM structures and binding of mouse and human ACE2 to SARS-CoV-2 variants of concern indicate that mutations enabling immune escape could expand host range. PLOS Pathogens. 2023;19(4):e1011206. doi:10.1371/journal.ppat.1011206
[2-2] Goike J, Hsieh CL, Horton AP, et al. SARS-CoV-2 Omicron variants conformationally escape a rare quaternary antibody binding mode. Communications Biology. 2023;6:1250. doi:10.1038/s42003-023-05649-6
[3-1] Bruguera ES, Mahoney JP, Weis WI. Reconstitution of purified membrane protein dimers in lipid nanodiscs with defined stoichiometry and orientation using a split GFP tether. Journal of Biological Chemistry. 2022;298(4):101628. doi:10.1016/j.jbc.2022.101628
[3-2] Bruguera ES, Mahoney JP, Weis WI. The co-receptor Tetraspanin12 directly captures Norrin to promote ligand-specific β-catenin signaling. eLife. 2025;13:RP96743. doi:10.7554/eLife.96743
[3-3] Bower JB, van der Velden WJC, Gomez KP, Pan M, Bumbak F, Vaidehi N, Ziarek JJ. Stabilization versus flexibility: detergent-dependent trade-offs in neurotensin receptor 1 GPCR ensembles. Protein Science. 2026;35(2):e70475. doi:10.1002/pro.70475
[4-1] Pacesa M, Nickel L, Schellhaas C, et al. One-shot design of functional protein binders with BindCraft. Nature. 2025;646:483–492. doi:10.1038/s41586-025-09429-6
[4-2] Fox DR, Asadollahi K, Samuels I, et al. Inhibiting heme piracy by pathogenic Escherichia coli using de novo-designed proteins. Nature Communications. 2025;16:6066. https://doi.org/10.1038/s41467-025-60612-9
资讯
AG, Gator Bio, Space 106, Stücki Park, Hochbergerstr. 60i, 4057 Basel,
Switzerland
江苏省苏州市工业园区星湖街 218 号 A2 栋 107、111
+86 400-998-2881